A COMPARATIVE ANALYSIS OF INTERPOPULATION INTERACTIONS IN PROTOZOA–BACTERIAL ASSOCIATIONS WITHIN A SINGLE SPECIES
A COMPARATIVE ANALYSIS OF INTERPOPULATION INTERACTIONS IN PROTOZOA–BACTERIAL ASSOCIATIONS WITHIN A SINGLE SPECIES

Abstract
The work addresses issues relating to the study of interpopulation interactions in protozoa–bacteria associations. A comparative analysis is presented of the results of the mutual influence between bacteria and protozoa, which is reflected in the positive dynamics of the prevalence of pathogenicity genes in bacterial populations and, consequently, an increase in their virulence. Escherichia coli and Lactobacillus spp. bacterial strains, heterogeneous in terms of virulence, were identified during associative interaction with the protozoan Blastocystis hominis in vivo. Testing of E. coli and Lactobacillus spp. strains, isolated from associations with moderately and highly virulent blastocysts, showed a marked division of bacterial populations according to the frequency of detection of genetic determinants of pathogenicity, compared with bacterial strains isolated from associations with avirulent B. hominis and in the control group.
1. Введение
Современное медико-биологическое сообщество часто оценивает этиопатогенетическую роль отдельных микроорганизмов, не принимая во внимание, ни количественный ни качественный состав того сообщества, где микробы проявляют свои свойства . Особое место в таких микросимбиоценозах занимают простейшие, которые, в ходе длительного эволюционного развития, выбрали хищническую стратегию доминирующим типом взаимоотношений с бактериями. В системе «хищник–жертва» простейшие быстро «выедают» бактерии , пока в бактериальной популяции не сформируются и не размножатся устойчивые к перевариванию клетки. В данном случае простейшие выступают как направляющий фактор естественного отбора, результатом которого является накопление и рекомбинация генов обеспечивающих адаптивное преимущество в конкретных условиях биотопа. Выживание бактерий внутри простейших обеспечивается разными механизмами, которые, в своей совокупности, меняют их вирулентность и приводят к формированию новых штаммов , . И если подобная стратегия выживания наблюдается у патогенных видов, трудно представить, что подобный приём не используют и другие виды, не являющиеся патогенными. Результатами постоянного межмикробного взаимодействия оказываются полезные и/или вредные последствия для организма хозяина.
Бластоцистоз — это относительно недавно изученный протозооз, вызывающий у клинических специалистов неоднозначное мнение об их этиологической и патогенетической значимости для человека и животных. , . Многочисленные данные, однозначно подтверждают тот факт, что нарушения микросимбиоценоза кишечника сопровождаются высокой выявляемостью простейших Blastocystis hominis .
Одними из наиболее важных сочленов кишечного биотопа, имеющих ключевое значение в формировании патобиомов являются Escherichia coli и Lactobacillus spp. . С одной стороны они обеспечивают ряд функций для защиты хозяина, с другой — сами могут стать причиной эндогенных заболеваний (кариес, септицемия, ревматическое поражение сосудов и др.) , , . Причины такого изменения кроются в межмикробных взаимодействиях, в том числе с бластоцистами. Интенсивное изучение механизмов формирования новых генетических вариантов микроорганизмов при их ассоциативном взаимодействии, как части естественного отбора внутри микробных популяций, позволит объективно оценить значение различных микроорганизмов в поддержание гомеостаза, а также степень их вовлечения в патогенез заболеваний.
2. Методы и принципы исследования
Штаммы Lactobacillus spp., Escherichia coli и B. hominis получали от 118 пациентов в возрасте от 20 до 60 лет, проходящих обследование на кишечный дисбиоз в клинико-диагностической лаборатории Ульяновской областной клинической больницы, г. Ульяновск.
Идентификацию микроорганизмов проводили с использованием микроскопического, бактериологического и паразитологического методов. В качестве контрольных использовали эталонные штаммы лактобактерий NK1 и эшерихий К-12, депонированных в ВНИИ генетики и селекции промышленных микроорганизмов. Степень вирулентности простейших бластоцист определяли путем внутрибрюшинного введения белым мышам (массой 17.4+1.5 г) 0.5 мл взвеси культуры изучаемых микроорганизмов, полученной на питательной среде Suresh . В работе использовали праймеры к генам, определяющим способность к образованию фимбрий 1-го типа (fimA), S (sfaA и sfaG), Р типа (papC и papH), бактериального адгезина интимина (eaeA), цитотоксического некротизирующего фактора-1 (cnf-1), энтерогемолизина (ehx), α-гемолизина (hlyB), шигаподобных токсинов 1 и 2 типов (stx1 и stx2). Праймеры синтезированы в НПФ «ДНК-технология» (Россия). Выделение бактериальной ДНК проводили по методу . Подбор праймеров и температуры отжига осуществляли при использовании пакета программ «Lasergene» (США). Регистрацию результатов ПЦР осуществляли путем электрофоретического разделения продуктов амплификации на окрашенном бромистым этидием агарозном геле. В ходе исследования применяли пакет программ Vector NTI Suite для подбора праймеров и оптимизации температурных режимов отжига при постановке полимеразной цепной реакции (ПЦР) и идентификации генетических детерминант патогенности в исследуемых штаммах на основе анализа электрофоретических профилей продуктов амплификации.
Полученные данные обработаны методами параметрической и непараметрической статистики, используемых для медико-биологических работ , .
3. Основные результаты
Из патобиоза обследованных пациентов выделены бластоцисты, которые в результате использования метода внутрибрюшинного заражения мышей были разделены на три группы — авирулентные (23 штамма), умеренно- (71 штамм) и высоковирулентные (24 штамма).
Результаты бактериологического анализа, подтверждённые линейным регрессионным анализом Пирсона, выявили статистически достоверные различия в количественном составе кишечного микробиоценоза между группами наблюдения (таблица 1).
Количественная характеристика микробиоценоза кишечника в группах с различной степенью вирулентности B. hominis и в контрольной группе
Микроорганизм | Контрольная группа (без B.hominis), КОЕ/г, lg | Авирулентные B.hominis (n=23), КОЕ/г, lg | Умеренновирулентные B.hominis(n=71), КОЕ/г, lg | Высоковирулентные B.hominis (n=24), КОЕ/г, lg |
Bifidobacterium spp. | 9,6±0,4 | 9,4±0,3 | 6,2±0,4* | 4,1±0,3* |
Lactobacillus spp. | 9,8±0,3 | 9,5±0,4 | 5,8±0,3* | 3,1±0,5* |
E. coli (нормальная фермент. активность) | 6,8±0,3 | 6,7±0,4 | 4,5±0,2* | 3,9±0,1* |
E. coli (лактозонегативные) | 0 | 0 | 3,5±0,2* | 4,8±0,3* |
E. coli (гемолитические) | 0 | 0 | 2,9±0,3* | 5,8±0,31* |
Enterococcus spp. | 5,2±0,3 | 5,4±0,3 | 7,1±0,2* | 8,3±0,2* |
Clostridium spp. | 3,8±0,2 | 4,0±0,3 | 5,9±0,3* | 7,2±0,3* |
Staphylococcus spp. | 2,1±0,2 | 2,3±0,2 | 4,2±0,3* | 5,8±0,2* |
Candida spp. | 1,8±0,2 | 2,0±0,2 | 3,8±0,3* | 5,1±0,3* |
Proteus spp. | 1,5±0,2 | 1,6±0,2 | 3,2±0,2* | 4,6±0,3* |
Klebsiella spp. | 2,0±0,2 | 2,1±0,2 | 3,9±0,2* | 5,3±0,3* |
Облигатная флора демонстрирует исключительно сильную обратную корреляцию. Для бактерий рода Bifidobacterium, снижение с lg 9,3±0,4 до lg 6,1±0,3 КОЕ/г при нарастании вирулентности, r=–0,9(p≤0,001). У Lactobacillus падение с lg 9,8±0,3 до lg 3,1±0,5 КОЕ/г, r=–0,8 (p≤0,001). E. coli с нормальной ферментативной активностью r=–0,9 (p≤0,001).
Среди представителей условно-патогенной флоры выявлена сильная прямая корреляция. Рост с lg 3,8±0,2 до lg 9,2±0,1 КОЕ/г у Clostridium, r=0,9 (p≤0,001). Для Staphylococcus показатель корреляции составил r=0,8 (p≤0,001), Candida — r=0,8 (p ≤ 0,001), Enterococcus — r=0,7 (p≤0,001). Klebsiella — r=0,7 (p < 0,05), Proteus — r=0,5 (p < 0,05).
Сила и направленность корреляций (r ≥ 0,7 для большинства таксонов) указывают на то, что именно вирулентность бластоцист, а не сам факт их присутствия, является определяющим фактором дисбиоза. Отсутствие сдвигов при авирулентных штаммах подтверждает специфичность эффекта.
Отмечены некоторые особенности отрицательной динамики количества бактерий E.coli. Снижение бактериальной обсемененности отмечено в отношении эшерихий с нормальной ферментативной активностью, обладающих высокой антагонистической способностью, с lg 6,8±0,3 до 3,9±0,1 КОЕ/г. Количество лактозонегативных и гемолитических форм E.coli, напротив, увеличилось с 0 до lg 3,5±0,2 и 5,8±0,31 КОЕ/г соответственно (р=0.001). Распределение фенотипических групп штаммов E.coli, изолированных из ассоциаций с бластоцистами представлено в таблице 2.
Количественное распределение штаммов Escherichia coli в изолированных протозойно-бактериальных ассоциациях
№ п/п | Фенотипические группы E.coli | Фенотипические группы Blastocystis hominis по признаку вирулентности | ||
Авирулентные (n=23), ед | Умеренновирулентные (n=71), ед | Высоковирулентные (n=24), ед | ||
1 | с нормальной ферментативной активностью | 18 | 12 | 0 |
2 | лактозонегативные | 5 | 51 | 9 |
3 | гемолитические | 0 | 8 | 15 |
Молекулярно-генетический анализ показал, что в общем пуле эшерихий (18 штаммов) с нормальной ферментативной активностью, выделенных из микробоценоза кишечника совместно с авирулентными бластоцистами только в 1 случае (5,5%) получены положительные сигналы при тестировании с ампликонами к фрагментам рарС, рарН, sfaA, eaeA и cnf1 генов (р=0,001).
В группе неферментирующих E.coli (5 штаммов) в патобиозе с авирулентными простейшими, положительные сигналы были получены в 2 случаях (40%). Статистически достоверными при формировании генетических комбинаций в геноме лактозонегативных бактерий, являлись сочетания генов рарС, рарН, sfaA, sfaG, eaeA, fimA, cnf1, ehx (р=0.001) (рис. 1).
Среди 12 штаммов эшерихий с нормальной ферментативной активностью, изолированных совместно с умеренновирулентными простейшими, положительные результаты ПЦР анализа получены в 6 случаях (50%). В формировании генетических комбинаций в геноме таких бактерий отмечены фрагменты генов рарС, рарН, sfaA, fimA, eaeA, cnf1, ehx (р=0,001).
В группе неферментирующих бактерий E.coli в этой же ассоциации (51 штамм) количество положительных сигналов при проведении реакции составило 31 (60,8%). Комбинации генов были аналогичны предыдущей группе, изменилось только их количественное обнаружение.
В общем пуле гемолитических бактерий E.coli (8 штаммов), исследованных при ассоциативном взаимодействии с умеренновирулентными B.hominis, положительные сигналы были отмечены у 6 штаммов (75%). Статистически достоверными при формировании генетических комбинаций в геноме гемолитических бактерий оказались генетические детерминанты рарС, рарН, sfaA fimA, sfaG, eaeA, cnf1, ehx и hlyB (р=0,001).
Результаты проведенного молекулярно-генетического анализа в микросимбиоценозе лактозонегативные Escherichia coli — высоковирулентные Blastocystis hominis, продемонстрировали, что среди всех 9 штаммов бактерий (100%) получены положительные сигналы к фрагментам генов рарС, рарН, sfaA fimA, sfaG, eaeA, cnf1, ehx, hlyB, stx1 и stx2 (р=0,001).
В пуле гемолитических эшерихий (15 штаммов), изолированных из патобиоза совместно с высоковирулентными бластоцистами положительная реакция на выявление искомых фрагментов генов патогенности отмечена также в 100% случаев (р=0.001). У всех испытуемых штаммов этой группы выявлены нуклеотидные последовательности генов рарС, рарН, sfaA fimA, sfaG, eaeA, cnf1, ehx, hlyB, stx1 и stx2.
В группе эталонных штаммов E.coli К12 ни в одном случае не выявлены генетические детерминанты искомых генов.
По итогам тестирования штаммов Lactobacillus spp., выделенных из ассоциации с авирулентыми бластоцистами, оказалось, что искомые ампликоны выявлялись только при использовании праймеров к fimА-гену. Частота встречаемости данного ампликона составила 13,1% (3 штамма).
У бактерий Lactobacillus spp., выделенных из ассоциации с умеренновирулентными бластоцистами в общем пуле (71 штамм) регистрировали наличие ампликонов генетических детерминант, обеспечивающие синтез фимбрий 1-, S-типов и альфа гемолизина (fimA, sfаА, sfaG, hlyB) в 39,4% случаев (28 штаммов).
При ассоциативном взаимодействии in vivo лактобактерий с высоковирулентными бластоцистами выявлены ампликоны фрагментов генов fimA, sfаА, sfaG, papС, papH, eaeA и hlyB в 45,8% случаев (11 штаммов).
В группе эталонных штаммов Lactobacillus spp. NK1 ни в одном случае не выявлены генетические детерминанты генов патогенности.
На рисунке 1 представлена динамика накопления генов патогенности в изученных разновидовых протозойно-бактериальных ассоциациях.
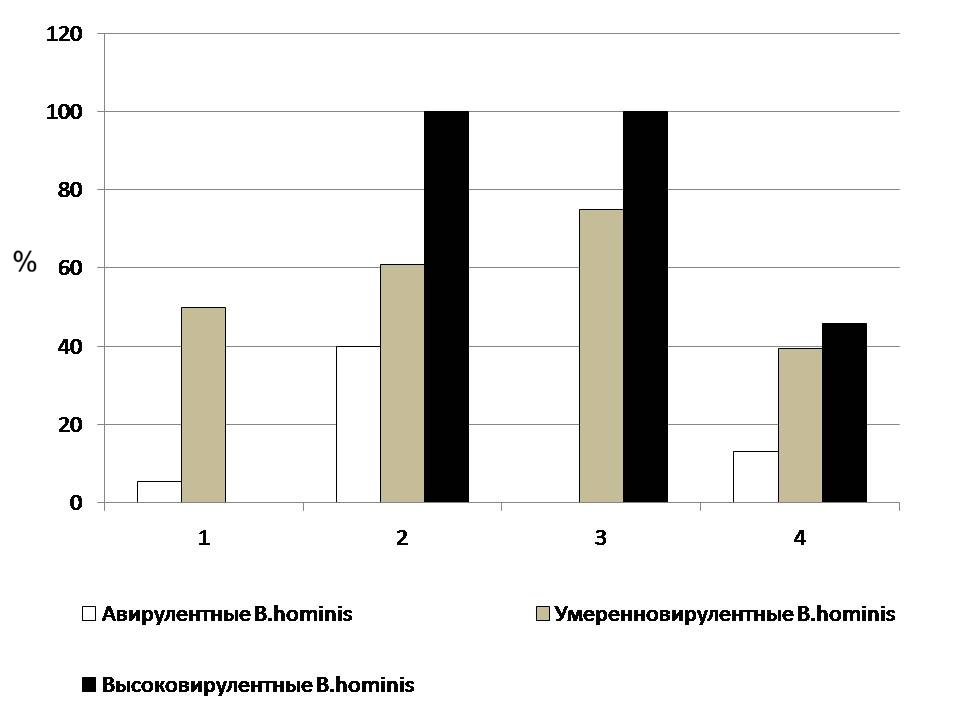
Частота встречаемости генов патогенности в различных протозойно-бактериальных ассоциациях:
1 — E.coli с нормальной ферментативной активностью, 2 — лактозонегативные E.coli, 3 — гемолитические E.coli, 4 — бактерии Lactobacillus spp.
4. Заключение
Полученные данные демонстрируют статистически достоверное увеличение встречаемости изучаемых генов, индуцированное усилением вирулентности симбионтов B.hominis. Это свидетельствует о том, что простейшие не только подавляют нормофлору, но и активно индуцируют горизонтальный перенос генов и селекцию поливирулентных клонов, что клинически проявляется как рост условно-патогенной флоры с приобретёнными факторами патогенности.
На основании совокупности представленных данных можно утверждать, что Blastocystis hominis (особенно его высоковирулентные штаммы) выступают как активный модулятор кишечного микробиоценоза, а не пассивный комменсал , . Причинно-следственная цепь включает:
1. Прямое селективное давление через фагоцитоз и переваривание чувствительных облигатных анаэробов (корреляция r=–0,9).
2. Индукцию горизонтального переноса генов в пищеварительных вакуолях, ведущую к накоплению детерминант патогенности у выживших бактерий (100% поливирулентных E.coli и 45,8% у Lactobacillus spp при высоковирулентных бластоцистах).
3. Формирование экологической ниши, благоприятной для доминирования условно-патогенных таксонов (Clostridium, Candida, Proteus), которые не только замещают нормофлору, но и усиливают собственную вирулентность.
4. Дозозависимость всех эффектов (отсутствие сдвигов при авирулентных штаммах и прогрессирующее нарастание дисбиоза при переходе к умеренно- и высоковирулентным) исключает альтернативные объяснения (например, влияние сопутствующей патологии или антибиотиков).
Таким образом, именно B.hominis, благодаря своей биологии (хищничество, способность индуцировать стрессовые ответы бактерий), является этиологическим фактором трансформации нормобиоценоза в патобиоз, что имеет прямое клиническое значение для диагностики, прогнозирования и терапии дисбиотических состояний.