Сравнительный анализ межпопуляционного взаимодействия в разновидовых протозойно-бактериальных ассоциациях
Сравнительный анализ межпопуляционного взаимодействия в разновидовых протозойно-бактериальных ассоциациях

Аннотация
В работе затронуты проблемы, связанные с изучением межпопуляционных взаимодействий в ассоциациях простейшие-бактерии. Приводится сравнительный анализ результатов взаимного влияния бактерий и простейших, которое нашло отражение в положительной динамике встречаемости генов патогенности в бактериальных популяциях, и как следствие, усиление их вирулентности. Выявлены гетерогенные по признаку вирулентности штаммы бактерий Escherichia coli и Lactobacillus spp. при ассоциативном взаимодействии с простейшими Blastocystis hominis in vivо. Тестирование штаммов E.coli и Lactobacillus spp., изолированных из ассоциаций с умеренно- и высоковирулентными бластоцистами, выявило выраженное расщепление популяций бактерий по частоте обнаружения генетических детерминант патогенности, по сравнению с бактериальными штаммами, выделенными из ассоциаций с авирулентными B.hominis и в контрольной группе.
1. Введение
Современное медико-биологическое сообщество часто оценивает этиопатогенетическую роль отдельных микроорганизмов, не принимая во внимание, ни количественный ни качественный состав того сообщества, где микробы проявляют свои свойства . Особое место в таких микросимбиоценозах занимают простейшие, которые, в ходе длительного эволюционного развития, выбрали хищническую стратегию доминирующим типом взаимоотношений с бактериями. В системе «хищник–жертва» простейшие быстро «выедают» бактерии , пока в бактериальной популяции не сформируются и не размножатся устойчивые к перевариванию клетки. В данном случае простейшие выступают как направляющий фактор естественного отбора, результатом которого является накопление и рекомбинация генов обеспечивающих адаптивное преимущество в конкретных условиях биотопа. Выживание бактерий внутри простейших обеспечивается разными механизмами, которые, в своей совокупности, меняют их вирулентность и приводят к формированию новых штаммов , . И если подобная стратегия выживания наблюдается у патогенных видов, трудно представить, что подобный приём не используют и другие виды, не являющиеся патогенными. Результатами постоянного межмикробного взаимодействия оказываются полезные и/или вредные последствия для организма хозяина.
Бластоцистоз — это относительно недавно изученный протозооз, вызывающий у клинических специалистов неоднозначное мнение об их этиологической и патогенетической значимости для человека и животных. , . Многочисленные данные, однозначно подтверждают тот факт, что нарушения микросимбиоценоза кишечника сопровождаются высокой выявляемостью простейших Blastocystis hominis .
Одними из наиболее важных сочленов кишечного биотопа, имеющих ключевое значение в формировании патобиомов являются Escherichia coli и Lactobacillus spp. . С одной стороны они обеспечивают ряд функций для защиты хозяина, с другой — сами могут стать причиной эндогенных заболеваний (кариес, септицемия, ревматическое поражение сосудов и др.) , , . Причины такого изменения кроются в межмикробных взаимодействиях, в том числе с бластоцистами. Интенсивное изучение механизмов формирования новых генетических вариантов микроорганизмов при их ассоциативном взаимодействии, как части естественного отбора внутри микробных популяций, позволит объективно оценить значение различных микроорганизмов в поддержание гомеостаза, а также степень их вовлечения в патогенез заболеваний.
2. Методы и принципы исследования
Штаммы Lactobacillus spp., Escherichia coli и B. hominis получали от 118 пациентов в возрасте от 20 до 60 лет, проходящих обследование на кишечный дисбиоз в клинико-диагностической лаборатории Ульяновской областной клинической больницы, г. Ульяновск.
Идентификацию микроорганизмов проводили с использованием микроскопического, бактериологического и паразитологического методов. В качестве контрольных использовали эталонные штаммы лактобактерий NK1 и эшерихий К-12, депонированных в ВНИИ генетики и селекции промышленных микроорганизмов. Степень вирулентности простейших бластоцист определяли путем внутрибрюшинного введения белым мышам (массой 17.4+1.5 г) 0.5 мл взвеси культуры изучаемых микроорганизмов, полученной на питательной среде Suresh . В работе использовали праймеры к генам, определяющим способность к образованию фимбрий 1-го типа (fimA), S (sfaA и sfaG), Р типа (papC и papH), бактериального адгезина интимина (eaeA), цитотоксического некротизирующего фактора-1 (cnf-1), энтерогемолизина (ehx), α-гемолизина (hlyB), шигаподобных токсинов 1 и 2 типов (stx1 и stx2). Праймеры синтезированы в НПФ «ДНК-технология» (Россия). Выделение бактериальной ДНК проводили по методу . Подбор праймеров и температуры отжига осуществляли при использовании пакета программ «Lasergene» (США). Регистрацию результатов ПЦР осуществляли путем электрофоретического разделения продуктов амплификации на окрашенном бромистым этидием агарозном геле. В ходе исследования применяли пакет программ Vector NTI Suite для подбора праймеров и оптимизации температурных режимов отжига при постановке полимеразной цепной реакции (ПЦР) и идентификации генетических детерминант патогенности в исследуемых штаммах на основе анализа электрофоретических профилей продуктов амплификации.
Полученные данные обработаны методами параметрической и непараметрической статистики, используемых для медико-биологических работ , .
3. Основные результаты
Из патобиоза обследованных пациентов выделены бластоцисты, которые в результате использования метода внутрибрюшинного заражения мышей были разделены на три группы — авирулентные (23 штамма), умеренно- (71 штамм) и высоковирулентные (24 штамма).
Результаты бактериологического анализа, подтверждённые линейным регрессионным анализом Пирсона, выявили статистически достоверные различия в количественном составе кишечного микробиоценоза между группами наблюдения (таблица 1).
Количественная характеристика микробиоценоза кишечника в группах с различной степенью вирулентности B. hominis и в контрольной группе
Микроорганизм | Контрольная группа (без B.hominis), КОЕ/г, lg | Авирулентные B.hominis (n=23), КОЕ/г, lg | Умеренновирулентные B.hominis(n=71), КОЕ/г, lg | Высоковирулентные B.hominis (n=24), КОЕ/г, lg |
Bifidobacterium spp. | 9,6±0,4 | 9,4±0,3 | 6,2±0,4* | 4,1±0,3* |
Lactobacillus spp. | 9,8±0,3 | 9,5±0,4 | 5,8±0,3* | 3,1±0,5* |
E. coli (нормальная фермент. активность) | 6,8±0,3 | 6,7±0,4 | 4,5±0,2* | 3,9±0,1* |
E. coli (лактозонегативные) | 0 | 0 | 3,5±0,2* | 4,8±0,3* |
E. coli (гемолитические) | 0 | 0 | 2,9±0,3* | 5,8±0,31* |
Enterococcus spp. | 5,2±0,3 | 5,4±0,3 | 7,1±0,2* | 8,3±0,2* |
Clostridium spp. | 3,8±0,2 | 4,0±0,3 | 5,9±0,3* | 7,2±0,3* |
Staphylococcus spp. | 2,1±0,2 | 2,3±0,2 | 4,2±0,3* | 5,8±0,2* |
Candida spp. | 1,8±0,2 | 2,0±0,2 | 3,8±0,3* | 5,1±0,3* |
Proteus spp. | 1,5±0,2 | 1,6±0,2 | 3,2±0,2* | 4,6±0,3* |
Klebsiella spp. | 2,0±0,2 | 2,1±0,2 | 3,9±0,2* | 5,3±0,3* |
Облигатная флора демонстрирует исключительно сильную обратную корреляцию. Для бактерий рода Bifidobacterium, снижение с lg 9,3±0,4 до lg 6,1±0,3 КОЕ/г при нарастании вирулентности, r=–0,9(p≤0,001). У Lactobacillus падение с lg 9,8±0,3 до lg 3,1±0,5 КОЕ/г, r=–0,8 (p≤0,001). E. coli с нормальной ферментативной активностью r=–0,9 (p≤0,001).
Среди представителей условно-патогенной флоры выявлена сильная прямая корреляция. Рост с lg 3,8±0,2 до lg 9,2±0,1 КОЕ/г у Clostridium, r=0,9 (p≤0,001). Для Staphylococcus показатель корреляции составил r=0,8 (p≤0,001), Candida — r=0,8 (p ≤ 0,001), Enterococcus — r=0,7 (p≤0,001). Klebsiella — r=0,7 (p < 0,05), Proteus — r=0,5 (p < 0,05).
Сила и направленность корреляций (r ≥ 0,7 для большинства таксонов) указывают на то, что именно вирулентность бластоцист, а не сам факт их присутствия, является определяющим фактором дисбиоза. Отсутствие сдвигов при авирулентных штаммах подтверждает специфичность эффекта.
Отмечены некоторые особенности отрицательной динамики количества бактерий E.coli. Снижение бактериальной обсемененности отмечено в отношении эшерихий с нормальной ферментативной активностью, обладающих высокой антагонистической способностью, с lg 6,8±0,3 до 3,9±0,1 КОЕ/г. Количество лактозонегативных и гемолитических форм E.coli, напротив, увеличилось с 0 до lg 3,5±0,2 и 5,8±0,31 КОЕ/г соответственно (р=0.001). Распределение фенотипических групп штаммов E.coli, изолированных из ассоциаций с бластоцистами представлено в таблице 2.
Количественное распределение штаммов Escherichia coli в изолированных протозойно-бактериальных ассоциациях
№ п/п | Фенотипические группы E.coli | Фенотипические группы Blastocystis hominis по признаку вирулентности | ||
Авирулентные (n=23), ед | Умеренновирулентные (n=71), ед | Высоковирулентные (n=24), ед | ||
1 | с нормальной ферментативной активностью | 18 | 12 | 0 |
2 | лактозонегативные | 5 | 51 | 9 |
3 | гемолитические | 0 | 8 | 15 |
Молекулярно-генетический анализ показал, что в общем пуле эшерихий (18 штаммов) с нормальной ферментативной активностью, выделенных из микробоценоза кишечника совместно с авирулентными бластоцистами только в 1 случае (5,5%) получены положительные сигналы при тестировании с ампликонами к фрагментам рарС, рарН, sfaA, eaeA и cnf1 генов (р=0,001).
В группе неферментирующих E.coli (5 штаммов) в патобиозе с авирулентными простейшими, положительные сигналы были получены в 2 случаях (40%). Статистически достоверными при формировании генетических комбинаций в геноме лактозонегативных бактерий, являлись сочетания генов рарС, рарН, sfaA, sfaG, eaeA, fimA, cnf1, ehx (р=0.001) (рис. 1).
Среди 12 штаммов эшерихий с нормальной ферментативной активностью, изолированных совместно с умеренновирулентными простейшими, положительные результаты ПЦР анализа получены в 6 случаях (50%). В формировании генетических комбинаций в геноме таких бактерий отмечены фрагменты генов рарС, рарН, sfaA, fimA, eaeA, cnf1, ehx (р=0,001).
В группе неферментирующих бактерий E.coli в этой же ассоциации (51 штамм) количество положительных сигналов при проведении реакции составило 31 (60,8%). Комбинации генов были аналогичны предыдущей группе, изменилось только их количественное обнаружение.
В общем пуле гемолитических бактерий E.coli (8 штаммов), исследованных при ассоциативном взаимодействии с умеренновирулентными B.hominis, положительные сигналы были отмечены у 6 штаммов (75%). Статистически достоверными при формировании генетических комбинаций в геноме гемолитических бактерий оказались генетические детерминанты рарС, рарН, sfaA fimA, sfaG, eaeA, cnf1, ehx и hlyB (р=0,001).
Результаты проведенного молекулярно-генетического анализа в микросимбиоценозе лактозонегативные Escherichia coli — высоковирулентные Blastocystis hominis, продемонстрировали, что среди всех 9 штаммов бактерий (100%) получены положительные сигналы к фрагментам генов рарС, рарН, sfaA fimA, sfaG, eaeA, cnf1, ehx, hlyB, stx1 и stx2 (р=0,001).
В пуле гемолитических эшерихий (15 штаммов), изолированных из патобиоза совместно с высоковирулентными бластоцистами положительная реакция на выявление искомых фрагментов генов патогенности отмечена также в 100% случаев (р=0.001). У всех испытуемых штаммов этой группы выявлены нуклеотидные последовательности генов рарС, рарН, sfaA fimA, sfaG, eaeA, cnf1, ehx, hlyB, stx1 и stx2.
В группе эталонных штаммов E.coli К12 ни в одном случае не выявлены генетические детерминанты искомых генов.
По итогам тестирования штаммов Lactobacillus spp., выделенных из ассоциации с авирулентыми бластоцистами, оказалось, что искомые ампликоны выявлялись только при использовании праймеров к fimА-гену. Частота встречаемости данного ампликона составила 13,1% (3 штамма).
У бактерий Lactobacillus spp., выделенных из ассоциации с умеренновирулентными бластоцистами в общем пуле (71 штамм) регистрировали наличие ампликонов генетических детерминант, обеспечивающие синтез фимбрий 1-, S-типов и альфа гемолизина (fimA, sfаА, sfaG, hlyB) в 39,4% случаев (28 штаммов).
При ассоциативном взаимодействии in vivo лактобактерий с высоковирулентными бластоцистами выявлены ампликоны фрагментов генов fimA, sfаА, sfaG, papС, papH, eaeA и hlyB в 45,8% случаев (11 штаммов).
В группе эталонных штаммов Lactobacillus spp. NK1 ни в одном случае не выявлены генетические детерминанты генов патогенности.
На рисунке 1 представлена динамика накопления генов патогенности в изученных разновидовых протозойно-бактериальных ассоциациях.
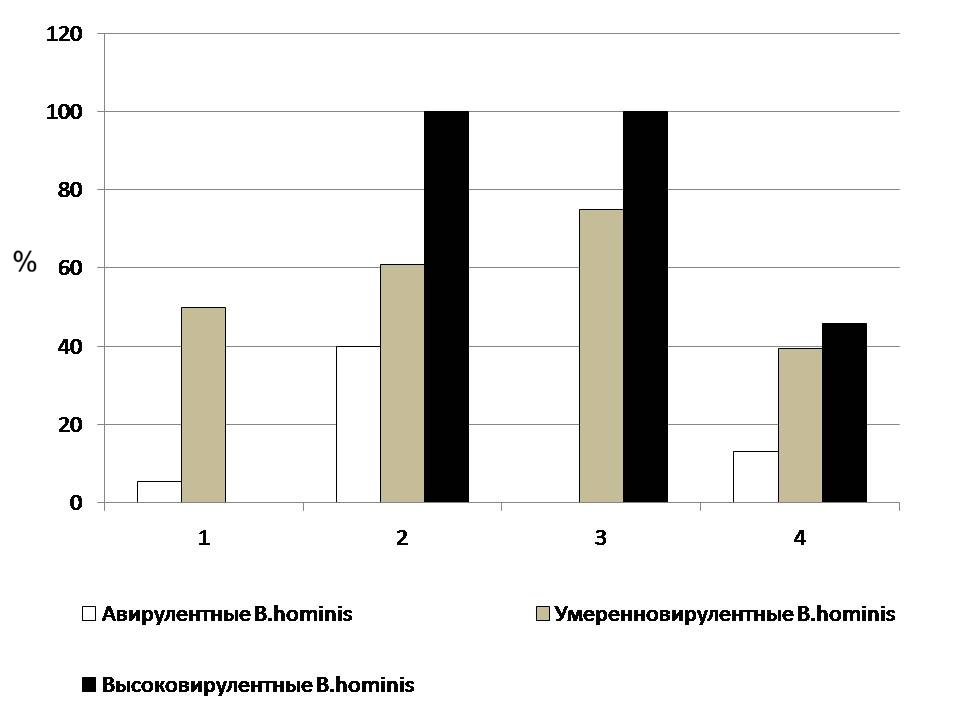
Частота встречаемости генов патогенности в различных протозойно-бактериальных ассоциациях:
1 — E.coli с нормальной ферментативной активностью, 2 — лактозонегативные E.coli, 3 — гемолитические E.coli, 4 — бактерии Lactobacillus spp.
4. Заключение
Полученные данные демонстрируют статистически достоверное увеличение встречаемости изучаемых генов, индуцированное усилением вирулентности симбионтов B.hominis. Это свидетельствует о том, что простейшие не только подавляют нормофлору, но и активно индуцируют горизонтальный перенос генов и селекцию поливирулентных клонов, что клинически проявляется как рост условно-патогенной флоры с приобретёнными факторами патогенности.
На основании совокупности представленных данных можно утверждать, что Blastocystis hominis (особенно его высоковирулентные штаммы) выступают как активный модулятор кишечного микробиоценоза, а не пассивный комменсал , . Причинно-следственная цепь включает:
1. Прямое селективное давление через фагоцитоз и переваривание чувствительных облигатных анаэробов (корреляция r=–0,9).
2. Индукцию горизонтального переноса генов в пищеварительных вакуолях, ведущую к накоплению детерминант патогенности у выживших бактерий (100% поливирулентных E.coli и 45,8% у Lactobacillus spp при высоковирулентных бластоцистах).
3. Формирование экологической ниши, благоприятной для доминирования условно-патогенных таксонов (Clostridium, Candida, Proteus), которые не только замещают нормофлору, но и усиливают собственную вирулентность.
4. Дозозависимость всех эффектов (отсутствие сдвигов при авирулентных штаммах и прогрессирующее нарастание дисбиоза при переходе к умеренно- и высоковирулентным) исключает альтернативные объяснения (например, влияние сопутствующей патологии или антибиотиков).
Таким образом, именно B.hominis, благодаря своей биологии (хищничество, способность индуцировать стрессовые ответы бактерий), является этиологическим фактором трансформации нормобиоценоза в патобиоз, что имеет прямое клиническое значение для диагностики, прогнозирования и терапии дисбиотических состояний.